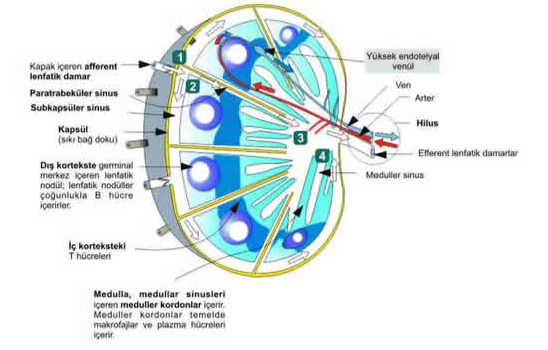
Yüksek endotel venüller ( HEV ), normal venüllerde bulunan daha düz endotel hücrelerinin aksine, dolgun endotel hücreleri ile karakterize edilen, özelleşmiş post- kapiller venüllerdir . HEV’ler, kanda dolaşan lenfositlerin doğrudan bir lenf düğümüne girmesini (HEV’den geçerek) sağlar .
İnsanlarda, HEV’ler tüm sekonder lenfoid organlarda bulunur ( kanın açık arteriollerden çıkıp kırmızı pulpaya girdiği dalak hariç ), vücuda dağılmış yüzlerce lenf düğümü , farenksteki bademcikler ve geniz etleri , ince bağırsaktaki Peyer yamaları (PI’ler), apandisit ve mide ve kalın bağırsaktaki küçük lenfoid doku kümeleri dahil diğer damarlardaki endotel hücrelerinin aksine, HEV’lerin yüksek endotel hücreleri, kübik bir morfolojiden oluşan ve lökositlerle etkileşime girmek için çeşitli reseptörlere sahip olan (lenfositler için özel ligandlar ifade eden ve yüksek düzeyde lenfosit ekstravazasyonunu destekleyebilen ) belirgin bir görünüme sahiptir. HEV’ler, naif lenfositlerin dolaşım sisteminden lenf düğümlerine girip çıkmasını sağlar. HEV hücreleri , lenfositler üzerindeki L-selektinlere bağlanan ve onları endotelden geçmeye hazırlanmak için HEV duvarına bağlayan spesifik yapışma molekülleri olan adresinleri ifade eder.
HEV’lerin endotel hücreleri, diğer damarları kaplayan endotel hücrelerinin düz morfolojisinden farklı olarak ‘tombul’ bir görünüme sahiptir ve bu nedenle kalınlıklarına göre yüksek endotel hücreleri olarak adlandırılırlar. Işık mikroskobik incelemeyle ortaya çıkarılan HEV’lerin bir diğer özelliği, duvarlarında çok sayıda lenfosit bulunmasıdır. Bu, HEV’lerin lenfosit toplanmasındaki işlevini gösterir ve bu damarların ilk tanımlandıkları zamandan itibaren lenfosit trafiğine neden dahil edildiğini açıklar.
Adaptif bir bağışıklık tepkisinin meydana gelmesi için T hücrelerinin aktive edilmesi gerekir. T hücreleri, özellikle dendritik hücreler olmak üzere antijen sunan hücrelere (APC) bağlı yabancı antijenleri tanıyarak aktive olurlar
Naif T hücrelerinin spesifik antijenlerine bağlanabilmeleri için, bu hücrelerle fiziksel temas kurmaları gerekir. Antijen seviyeleri genellikle düşük olduğundan, kan dolaşımında temas olasılığı düşüktür. Bu nedenle, T hücrelerinin vücuda giren yabancı antijenleri örnekleyebilecekleri bir bölgeye ihtiyaçları vardır. Bir dendritik hücre gibi bir APC yabancı bir antijene bağlandığında; aktive olur ve afferent lenf damarları yoluyla lenf düğümlerine (T hücreleri tarafından antijen örneklemesinin yapıldığı yerler) hareket eder. Dolaşımdaki naif T hücreleri, yabancı antijenleri taramak için düzenli olarak HEV yoluyla lenf düğümleri arasında hareket eder. Böyle bir antijenle karşılaştıklarında, hücre aktive olur ve bağışıklık sistemi enfeksiyonun etken maddesine karşı bir yanıt oluşturur.
Farede CD11c + dendritik hücrelerin tükenmesi HEV fenotipini önemli ölçüde değiştirdi. HEV’in normal fenotipi muhtemelen DC salgılanan lenfotoksin (TNF-beta) tarafından korunmaktadır.
HEV kübik endotel hücreleri, GlyCAM-1 (mukozal HEV’de bu MAdCAM-1’dir ), ICAM-1 ve CD34 yapışma moleküllerini ifade eder. Ayrıca kemokin CCL21 salgılarlar . Naif T hücreleri, CCR7 reseptörü ve yapışma molekülleri L-selectin ve LFA-1 ifade eder.
Naif T hücreleri dolaşımda hareket ettikçe, damar duvarlarındaki endotel hücrelerinin üzerinde ‘yuvarlanırlar’. Yuvarlanma mekanizması, naif T hücrelerinin yüzeyindeki L-selectin moleküllerinin HEV hücrelerindeki GlyCAM-1 ve CD34 molekülleriyle zayıf bir şekilde etkileşime girmesine yardımcı olur. Daha sonra kemokin CCL21, T hücresi üzerinde ifade edilen reseptörü CCR7’ye bağlanır. Bu bağlanma, LFA-1 molekülünde sıkı bir şekilde ICAM-1’e bağlanmasına neden olan konformasyonel bir değişikliğe neden olur.
Bu sıkı bağlanma, T hücresinin daha fazla hareket etmesini durdurur ve bu hücre daha sonra ‘diapedez’ (veya ekstravazasyon) adı verilen bir süreçle HEV hücreleri arasında lenf düğümüne hareket edebilir.
Yoğun çabalara rağmen, birkaç HEV’ye özgü belirteç tanımlanmıştır. Şu anda mevcut olan en iyi HEV belirteci, lenfoid dokulardaki tüm HEV’leri boyayan ve dalak, timus veya lenfoid olmayan dokulardaki postkapiller venüller veya büyük damarlarla reaksiyona girmeyen monoklonal antikor (mAb) MECA-79 tarafından tanınan bir karbonhidrat epitopudur. MECA-79 mAb, in vivo olarak HEV’lerden lenf düğümlerine lenfosit göçünü ve in vitro olarak lenf düğümü ve tonsil HEV’lerine lenfosit yapışmasını engeller . Başlangıçta fare HEV’lerine karşı üretilmesine rağmen, mAb türler arasında geniş bir çapraz reaksiyon gösterir. MECA-79 karbonhidrat epitopu, hem fare hem de insanda L-selektin için bir HEV karşı reseptör ailesini dekore eder16. İnsan HEV’lerinde ifade edilen ancak diğer damarlarda ifade edilmeyen bir karbonhidrat epitopunu tanıyan başka bir mAb, HECA-452 tanımlanmıştır. Bununla birlikte, MECA-79’dan farklı olarak, bu mAb HEV’ye özgü değildir: HECA-452, sialil-Lewis x ve sialil-Lewis a oligosakkaritleriyle ilişkili bir karbonhidrat epitopunu tanır ve yüksek endotel ile reaksiyona girmesinin yanı sıra monosit hücreleri, dendritik hücreler ve deriye yerleşen hafıza lenfositlerinin bir alt kümesi ile çapraz reaksiyona girer. [
Ayrıca farede iki başka HEV belirteci daha tanımlanmıştır:
1-mAb MECA-325, interferon γ (IFN-γ) tarafından lenfoid olmayan endotel hücrelerinde indüklenebilen bir antijeni tanımlar; ve
2-mAb MECA-367, mukozal HEV’lerde ve intestinal lamina proprianın venüllerinde ifade edilen ancak tümör nekroz faktörü cx (TNF-α) ve IL-l tarafından mukozal olmayan endotel hücrelerinde indüklenebilen L-selectin ve α4β7 integrin için bir karşı reseptör olan mukozal adressin hücre yapışma molekülü 1’i (MAdCAM-1) tanır.
HEV özelliklerine sahip damarlar insan dokusunda uzun süreli kronik inflamasyonla ilişkili olarak ortaya çıkar.
Romatoid artritte, sinovyal membrandaki lenfosit infiltrasyon alanlarında sülfat katılımının seviyesi ve endotelin ‘tombulluğu’ (veya ‘yüksekliği’), perivasküler infiltratlardaki lenfosit konsantrasyonuyla yakından ilişkili olduğu gözlemlenmiştir. Benzer şekilde, bu damarlardaki MECA-79 ve HECA-452 ekspresyonu, kapsamlı lenfoid infiltratlarla ilişkili olarak en belirgindir. Bu nedenle, romatoid artritli hastaların sinovyal membranında gerçek HEV’lerin gelişmesi, lenfositlerin büyük ölçekli akışını kolaylaştırarak kronik inflamasyonun artmasına ve devam etmesine yol açması muhtemeldir. Uzun süreli inflamasyon uyarısından sonra HEV’lerin gelişimi hastalıklı sinovyumla sınırlı değildir, aynı zamanda özellikle bağırsak ve tiroid olmak üzere diğer dokularda da ortaya çıkabilir.
İnflamatuar bağırsak hastalıklarında ( Crohn hastalığı ve ülseratif kolit ) bağırsağın veya otoimmün tiroiditte ( Graves hastalığı ve Hashimoto tiroiditi ) tiroidin kronik iltihabı sırasında, yoğun lenfositik infiltrasyon alanları, MECA-79 ve HECA-452 ekspresyonu gösteren dolgun endotelyumlu damarlar içerir.
Bu gözlemler, HEV’lerin bağırsağa veya tiroide anormal lenfosit toplanmasını sağlayarak bu hastalıkların patogenezinde önemli bir rol oynayabileceğini düşündürmektedir. Dolgun endotelyumlu MECA-79+ venüller, birçok kutanöz inflamatuvar lezyon dahil olmak üzere diğer kronik inflamasyon bölgelerinde de tespit edilmiştir. Birçok farklı insan kronik inflamatuvar hastalığında MECA-79+ HEV benzeri damarların varlığı, L-selektinin kronik inflamatuvar bölgelerdeki lenfosit göçünde büyük bir rol oynama olasılığının yüksek olduğunu göstermektedir.